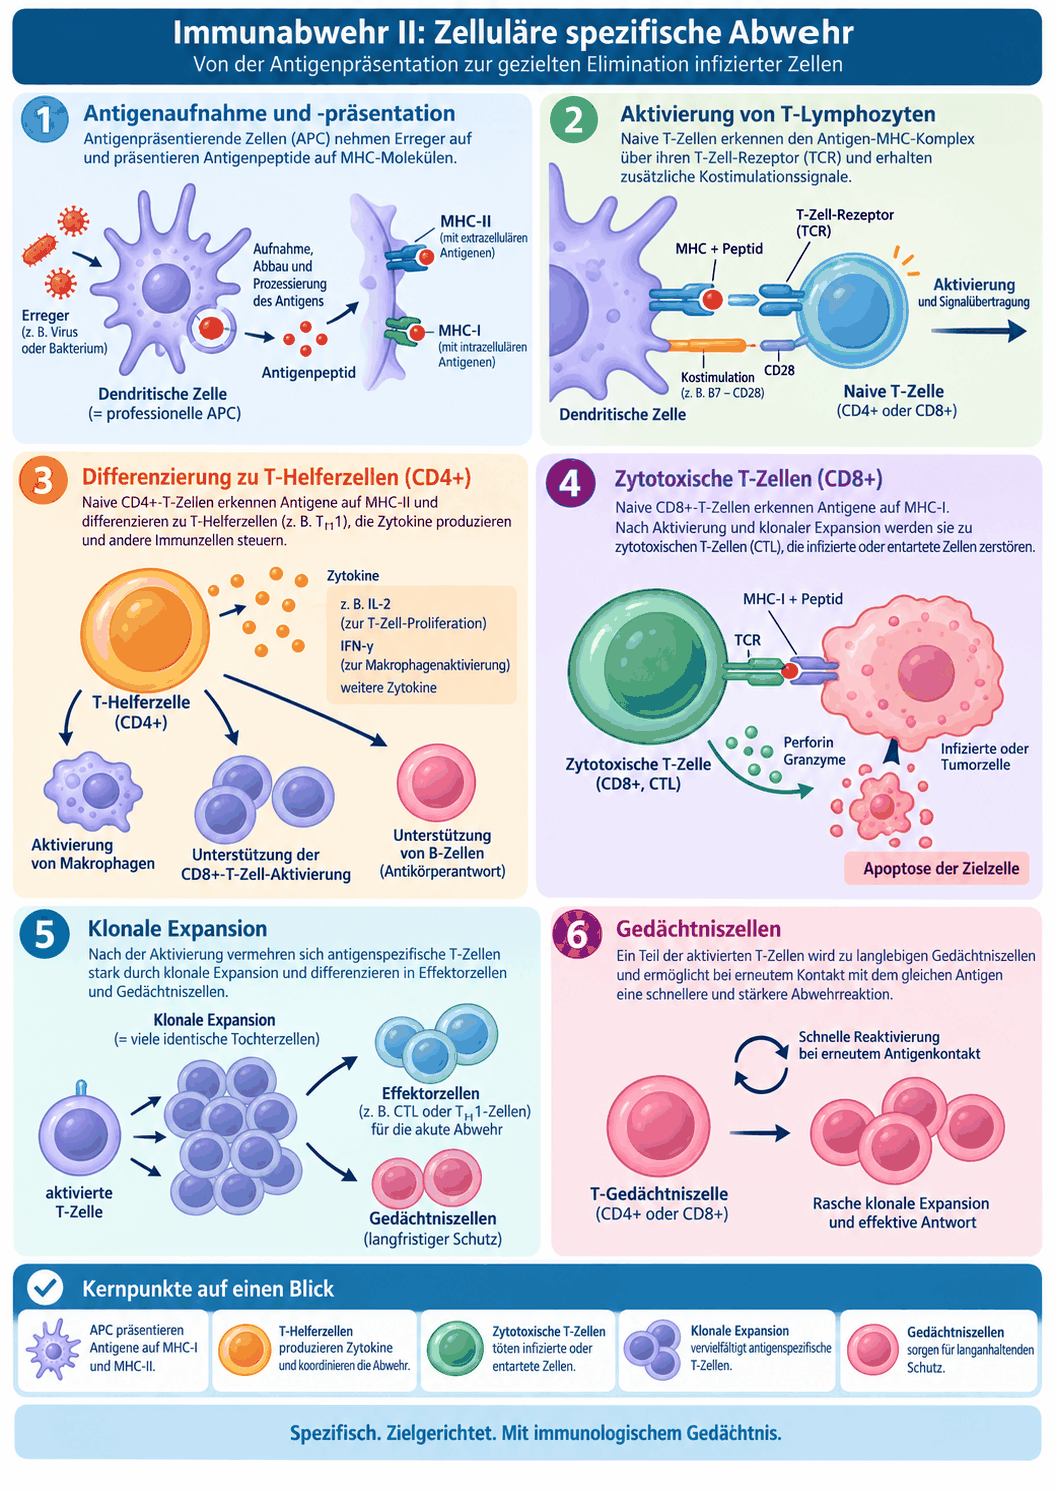
Eine T-Zelle erkennt kein ganzes Bakterium und kein intaktes Protein. Sie erkennt ausschließlich kurze Peptidbruchstücke, die ihr in der Bindungstasche eines Gewebeverträglichkeitsmoleküls vorgezeigt werden. Beim Menschen tragen diese Moleküle die Bezeichnung der Leukozytenantigene und kommen in zwei Klassen vor. Die Klasse I findet sich auf allen kernhaltigen Zellen und präsentiert Peptide aus dem Zytosol, also aus dem Inneren der Zelle, wo Viren sich vermehren und wo Tumorproteine entstehen. Die Klasse II tragen nur die professionellen antigenpräsentierenden Zellen, vor allem dendritische Zellen des lymphatischen Gewebes, außerdem Makrophagen und B-Zellen; sie präsentiert Peptide aus aufgenommenen Vesikeln, also Material von außen.
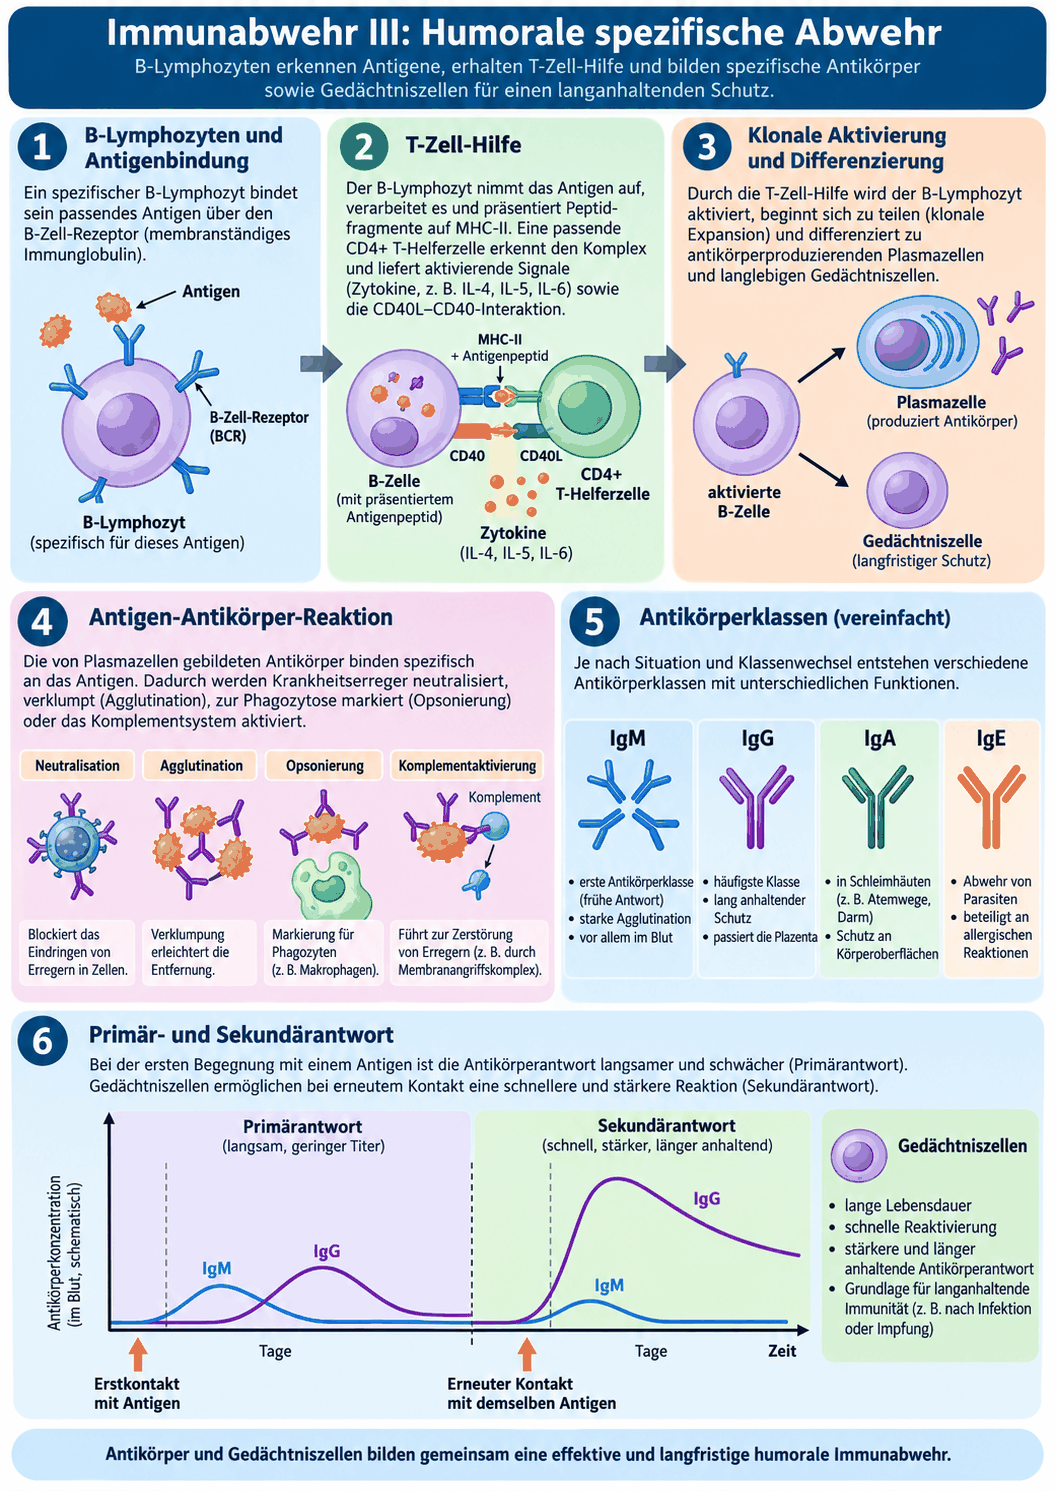
Aus dieser Arbeitsteilung folgt die gesamte Logik der zellulären Abwehr. Was über Klasse I gezeigt wird, meldet einen Schaden im Inneren der zeigenden Zelle und wird von zytotoxischen T-Zellen mit dem Korezeptor CD8 gelesen. Was über Klasse II gezeigt wird, meldet einen Fund aus der Umgebung und wird von T-Helferzellen mit dem Korezeptor CD4 gelesen. Jede kernhaltige Zelle legt damit fortlaufend Rechenschaft über ihren Inhalt ab, während nur wenige spezialisierte Zellen über die Lage im Gewebe berichten.
Die Begegnung selbst beginnt unspezifisch: Adhäsionsmoleküle der präsentierenden Zelle und der T-Zelle halten beide kurz zusammen, damit der Rezeptor prüfen kann. Passt das Peptid, verfestigt sich der Kontakt, und die T-Zelle wird durch ein Doppelsignal aktiviert. Das erste Signal ist die Erkennung des gebundenen Antigens durch den T-Zell-Rezeptor mit seinem Korezeptor. Das zweite Signal ist die Mitstimulierung, also die Bindung eines weiteren Oberflächenproteins der präsentierenden Zelle an einen Partner auf der T-Zelle. Erst beide zusammen lösen die Bildung von Interleukin-2 und des zugehörigen Rezeptors aus, und erst Interleukin-2 treibt die klonale Vermehrung an.
Der Sinn dieser Doppelsicherung zeigt sich beim Ausbleiben des zweiten Signals. Erkennt eine T-Zelle ihr Antigen ohne Mitstimulierung, etwa an einer gewöhnlichen Gewebezelle, wird sie nicht aktiviert, sondern dauerhaft stillgelegt. Diese Anergie ist die periphere Toleranz und zugleich der Hauptangriffspunkt der medikamentösen Immunsuppression.